介绍纤连蛋白作为ECM”实时调度员”的结构与力学敏感性,及其在基质组装和创伤修复中的作用。
在讨论细胞外基质(ECM)材料时,胶原常被置于中心位置,这有坚实的科学依据。胶原是 ECM 中含量最高的结构蛋白:I 型胶原构成皮肤、肌腱、骨等间质组织的力学主干,IV 型胶原编织了基底膜的精密网络【1】。它不仅是物理支撑,也是细胞主动识别的信号源:整合素家族中有专门一支(如 α1β1、α2β1 等)是胶原的特异性受体,使细胞能直接阅读胶原纤维的取向、刚度与拓扑结构,从而调控迁移、分化等行为【3】。
然而,一个功能完整的 ECM,并非仅由“胶原网络”构成。细胞与 ECM 的对话是持续、动态且高度有序的。
如果胶原是组织的“骨架”和“基础语言”,那纤连蛋白(Fibronectin,FN)则像是 ECM 系统中一位关键的“实时调度员”。它不替代胶原的核心地位,但是在胶原提供的结构框架和基础语言之上,**负责增强细胞识别、黏附、力学感知,并动态组织其他 ECM 成分,**使基质网络成为能被细胞实时感知和重塑的智能微环境。
也正因为 FN 的价值高度依赖 ECM 的整体系统,一个看似简单的问题反而最能说明它的特殊性:如果 FN 如此关键,为什么它并没有像胶原那样,广泛作为单一成分的再生医疗产品出现?
一、系统价值:为什么 FN 至今没有作为独立产品出现
答案藏在FN的系统依赖性里。FN 的功能发挥,深度依赖于完整的 ECM 语境:
第一,无法自行组装:FN 的纤维化组装需要整合素介导的黏附、细胞牵引力、肌动蛋白骨架张力以及 FN-FN 相互作用等共同参与。脱离细胞参与的可溶性 FN,很难自发形成成熟、稳定、具备组织语境的不溶性纤维网络。
第二,功能依赖胶原网络:FN 的双向信号与力学耦合并不只由 FN 分子本身决定,还需要胶原等基质组分提供空间锚定和组织背景。脱离完整 ECM 系统的单一 FN 分子,难以独立承担动态组装、力学传递和组织重塑中的全部调节功能。
因此,FN 作为动态调度员,是 ECM 系统中“团队协作”的典范,而不是被完全剥离为一个孤立的“明星成分”。FN 的价值嵌入在胶原网络、整合素受体、细胞骨架张力和基质周转共同构成的系统关系之中。
但 FN 之所以能在这个系统中充当调度员,而不是被其他蛋白替代,根源在于它的分子结构赋予了它一种独特能力:力学敏感性。
二、FN 的独特角色:力-化学信号的动态转换器
FN 是一种约 500 kDa 的二聚体糖蛋白,由两条亚基通过 C 端二硫键连接成反平行二聚体,其分子结构,特别是 III 型重复模块,缺乏稳固的二硫键,这使其构象在细胞施加的牵引力下易于变化。
这种力学敏感性是 FN 动态功能的基础:当细胞通过整合素“拉扯”FN 时,拉力可导致 FN 分子从紧凑构象变为伸展状态,从而暴露出新的结合位点【1】。
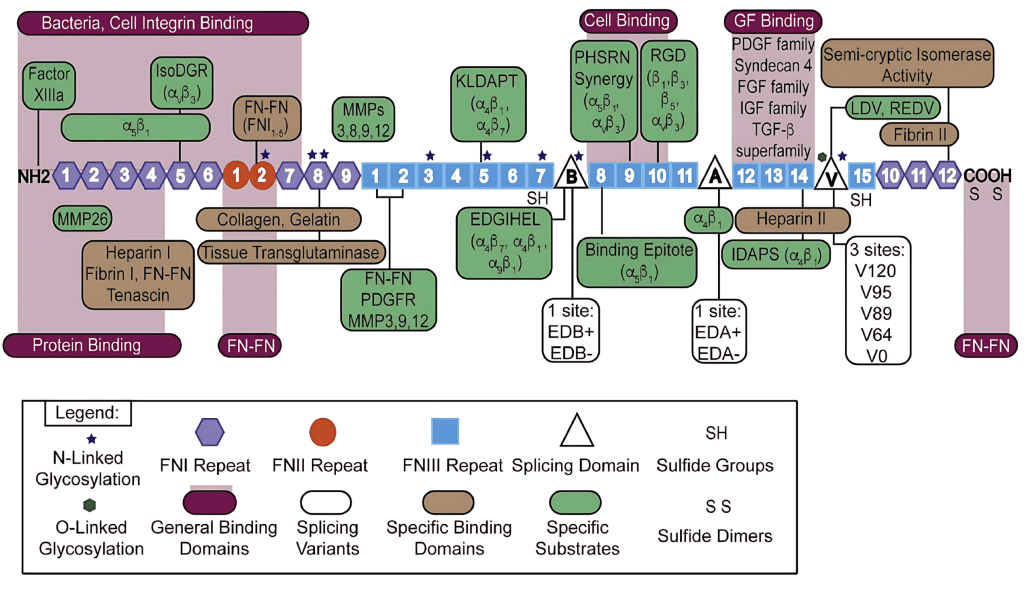
图 1|纤连蛋白的域结构与主要结合位点。N 端组装域、胶原与肝素结合域、含 RGD 与协同位点的细胞结合域沿分子轴线分布。图源:Patten & Wang, 2021。
这意味着,FN 不仅是一个被细胞识别的“靶点”,更是一个能将细胞活动产生的机械力,实时转化为调节基质组装的生化信号的转换器。它弥补了胶原网络在快速、局部力学信号响应上的不足,为 ECM 增添了另一层调控维度。
三、FN 与细胞的双向深度对话:不只是黏附,更是整合
胶原可以通过其特异性整合素与细胞进行双向信号传导。而 FN 与 α5β1 整合素之间,同样存在一套典型的双向、变构、力学耦合接口,揭示了细胞-基质互作的精细调控。
FN 通过其 III10 模块的 RGD 序列和 III9 模块的 PHSRN 协同位点,与 α5β1 整合素高亲和力结合【1】。这种结合触发了整合素构象变化,开启双向变构信号传导【3】:
由外向内:FN-整合素结合,激活细胞内 FAK/Src 等通路,调控细胞行为。
由内向外:细胞内信号,如通过踝蛋白,可增强整合素对 FN 的亲和力,让细胞“抓”得更牢。
更重要的是,这种双向对话与力学传感耦合。细胞对 FN 的牵引力,正是驱动 FN 纤维组装和基质重塑的重要动力。
因此,**FN 不仅是细胞附着的一个“锚点”,更是细胞用来感知和改造其周围基质微环境的“杠杆”和“信号放大器”。**它与胶原提供的信号协同,构成了细胞解读 ECM 复杂信息的“语义网络”。
四、FN 的动态周转:ECM 生命力的体现者
成熟的胶原网络代谢缓慢,提供较长期的稳定性。相比之下,FN 的显著特征是高度的动态周转。即使在成熟组织中,FN 也需要细胞持续合成并补充新单元以维持网络水平,否则 FN 与依赖 FN 锚定的 ECM 蛋白就会同步流失【1】。
FN 矩阵的周转由多种机制协同调控:ADAMTS9 等蛋白酶可降解成纤维细胞合成的 FN 网络;MT-MMP1(也称 MMP14)介导 FN 切割并伴随 α5β1 整合素的内吞;caveolin-1 介导的非蛋白酶通路同样参与其中【2】。正是这种持续、可控的“吐故纳新”,使 FN 能在创伤修复全程,即凝血、炎症、增殖、重塑四阶段,灵活引导修复进程。
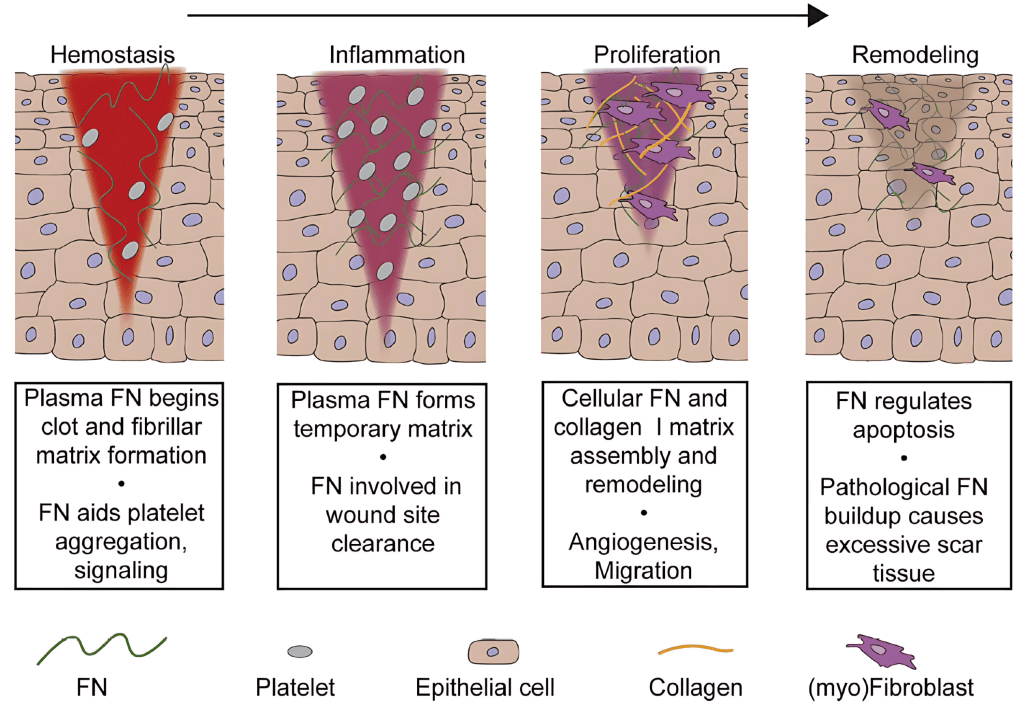
图 2|纤连蛋白在创伤修复四阶段中的角色。从血凝块、炎症期、增殖期到重塑期,FN 形态与功能持续变化。图源:Patten & Wang, 2021。
值得注意的是,FN 的动态性并不意味着其在脱细胞材料中一定难以保留。在温和的脱细胞工艺下,成熟的不溶性 FN 网络可以被保留在 ECM 材料中【1】。这提示我们,FN 的动态性并非“不稳定”,而是其功能活性的体现。评估一份脱细胞 ECM(dECM)材料,关键之一就是看其工艺是破坏了 FN 的动态功能结构,还是妥善保留了它。
结语
ECM 不是只有胶原。
胶原构成 ECM 的主要结构框架和重要识别核心;FN 则在此框架之上承担力学感知、动态组装、双向信号和时空重构等调节功能。
两者稳定性不同、周转方式不同,却共同决定细胞如何读取和改造微环境。
因此,讨论 FN 的意义,不是为 ECM 再制造一个新的“单一核心”,而是提醒我们:**真正的 ECM 功能从来不是由某一个明星分子单独完成的。**对于 ECM 类材料而言,问题也不应停留在“是否含有胶原”或“是否检出 FN”,而应进一步追问:材料是否尽可能保留了胶原网络、FN 矩阵及其与细胞识别和基质周转相关的结构关系。
参考文献
【1】Sun Y, Hamlin AJ, Schwarzbauer JE. Fibronectin matrix assembly at a glance. J Cell Sci. 2025;138(6). doi:10.1242/jcs.263834
Fibronectin matrix assembly at a glance.pdf
【2】Patten J, Wang K. Fibronectin in development and wound healing. Adv Drug Deliv Rev. 2021;170:353-368. doi:10.1016/j.addr.2020.09.005
Fibronectin in development and wound healing.pdf
【3】Hynes RO. Integrins: bidirectional, allosteric signaling machines. Cell. 2002;110(6):673-687. doi:10.1016/S0092-8674(02)00971-6
Integrins Bidirectional Review Allosteric Signaling Machines.pdf