阐述ECM三维结构如何通过空间、方向、力学与信号地址向细胞传递信息,以及结构被破坏后的信息失真。
同样由碳原子组成,石墨和金刚石却呈现出截然不同的理化性质。决定差异的并非元素本身,而是原子在空间中的微观组织架构。
ECM也是如此。
上一篇我们梳理了ECM的成分清单**:胶原提供框架,弹性蛋白赋予回弹力,糖蛋白建立识别界面,硫酸化GAG与蛋白聚糖参与信号调控。**但如果把这些成分从三维网络中拆解出来,摊平在一个二维基底上,细胞还能读出同样的信息吗?
Doyle等人的实验给出了一个非常直观的证据:在配体条件基本相同的前提下,仅改变空间拓扑结构,细胞的迁移速度、形态与方向性都会发生显著变化 [1]。
成分没有变,改变的只是结构。但细胞的行为被重写了。
这说明,ECM的三维结构不是附属属性,而是可以被细胞直接读取的信息。
一、ECM不是“堆起来”的,它是“长出来”的
ECM的三维结构不是成分的随机堆积,而是层级组装的结果。
第一层级,分子层级的精密组装(化学键主导)
以软组织ECM中含量最高的一型胶原为例,每条α链(一级结构)均具有左手螺旋(二级结构),三条左手螺旋链缠绕成一条右手超螺旋(三级结构,胶原蛋白分子),直径约1.5纳米。三螺旋分子之间按照固定的错位排列方式首尾堆叠,形成直径10到300纳米的胶原原纤维(四级结构),表面呈现出规律的D周期条纹(周期约67nm),这是电镜下辨认胶原原纤维最经典的标志 [2]。
三股螺旋是否成立,决定了胶原有没有被正确“折叠”为可识别的状态;D 周期是否建立,则意味着分子间的错位排布关系是否基本正确。[2]。换句话说,这一层解决的是:细胞还能不能认出它、还能不能和它建立正确连接。
第二层级:组织层级的物理构建(多成分协同)
这一阶段不止是胶原的进一步组装,还是多种ECM成分共同构建的三维物理世界。胶原原纤维,通过物理捆束,形成微米级的胶原纤维(Fiber)。从原纤维到纤维,本质上是同一结构单元的物理捆束——内部的分子排列没有发生新的构象变化,更多是尺寸的放大和力学强度的增加。细胞对ECM的识别,在原纤维层面就已经建立。
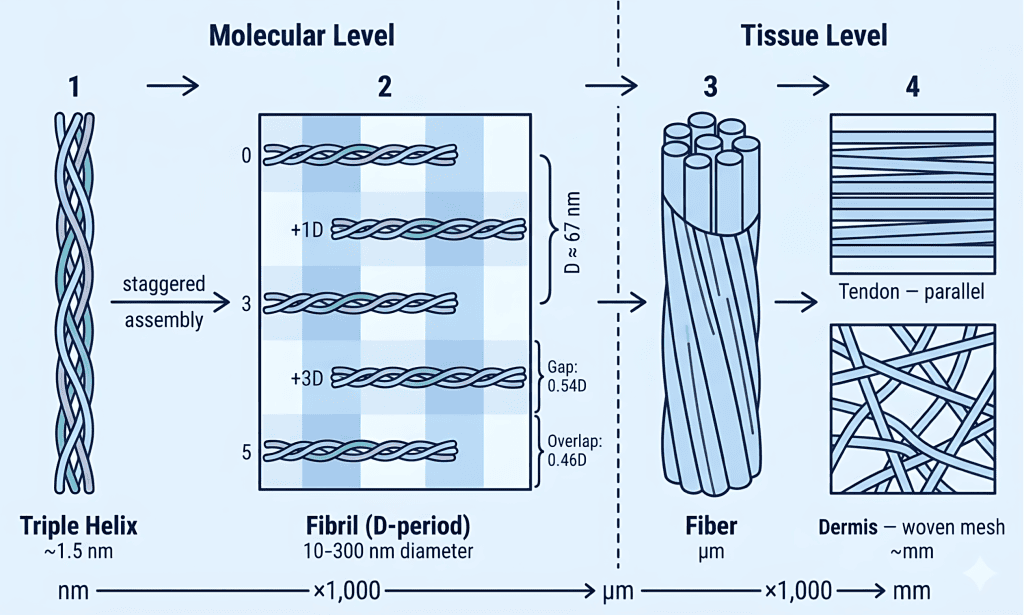
图1| ECM三维结构由多成分协同组装形成,决定取向、孔隙与力学环境
胶原纤维与ECM其他成分依靠物理缠绕和空间排布互相锚定,共同“编织”成具有特定取向、孔隙率和刚度的三维网络。
ECM 的尺寸、取向、刚度、孔隙和整体组织方式,都会直接塑造细胞行为。也就是说,ECM 的功能不只写在“分子组成”里,更写在“这些分子如何在空间中被组织起来”这件事上 [3]。
二、细胞读到的,不只是配体,而是一整套结构指令
当细胞进入 ECM,它面对的不是一块静止背景,而是一张持续发出指令的三维地图。
这张地图,至少包含四类信息。
空间通行权
ECM不是实心体,而是布满孔隙的拓扑结构。Wolf等人的研究表明,当孔隙尺度低于细胞核通过所需的变形阈值时,迁移会显著受限,甚至完全停止 [4]。挡住细胞的,不是化学信号的缺失,而是空间本身不再允许通过。
方向指令
细胞为什么会朝某个方向走?
很多时候,并非因为前方“有化学信号”,而是因为前方“有路”。ECM的一维纤维拓扑结构为细胞提供了物理性的方向信息,这种现象即接触引导(contact guidance)。细胞在探索周围环境时,伪足会优先沿纤维长轴方向延伸,从而产生高效的方向性迁移[1]。在这里,ECM结构扮演的角色不是化学信号,而是物理地形,它通过与细胞骨架的力学耦合,决定了细胞的行动轨迹。
力学状态
细胞不只是贴在 ECM 上,它还会主动拉扯它。Discher、Janmey 和 Wang 早在 2005 年就提出,组织细胞会在贴附后通过牵拉感知周围环境的刚度[5]。Engler等人的经典实验证明,同样的间充质干细胞,在接近脑组织刚度的软基质上更偏向神经样,在接近肌肉刚度的基质上更偏向肌源性,而在更硬、接近骨样环境的基质上则更偏向成骨分化 [6]。这里真正起作用的,不是额外添加的诱导因子,而是基质本身的物理属性。
信号地址
ECM 可以结合、保护、富集和释放生长因子等关键信号分子[8]。Hynes 强调,ECM 蛋白作为有组织的固相配体(Organized Solid-Phase Ligands),能够整合并呈递复杂的多重信号。这意味着,生长因子并不是均匀漂浮在环境中等待随机碰撞,而是被编排到特定位置、特定间距和特定浓度上。信号固然重要,但信号出现在哪里,它的 “空间地址”同样重要[7]。
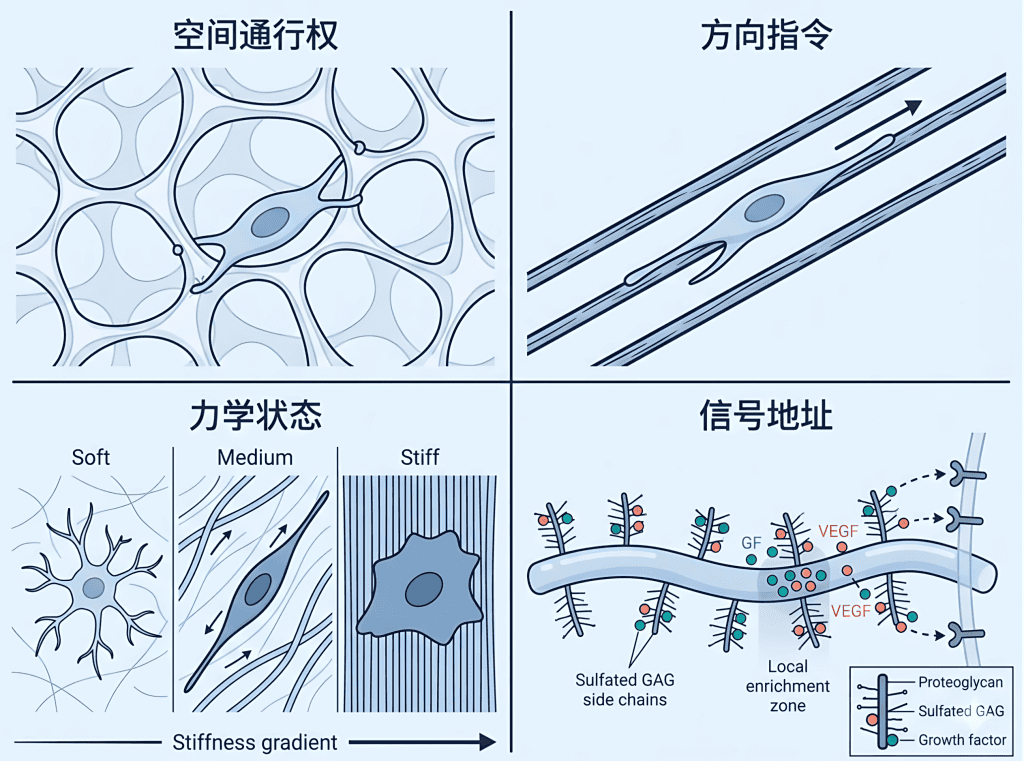
图2| 细胞读取ECM结构信息,包括空间通行、方向引导与力学信号
四类信息有一个共同点:它们都不需要额外的化学信号输入,而是结构本身的物理属性和空间组织在直接发出指令。
空间通行权、方向、力学状态、化学梯度的地址——全部写在结构里。细胞不只是居住在ECM中,它在持续读取ECM。
三、结构一旦被破坏,信息开始失真
理解结构最好的方式,往往不是看它存在时能做什么,而是看结构被破坏时会发生什么?
ECM中的关键蛋白并不是简单的线性分子,而是依赖特定三维构象发挥功能。细胞对它们的识别,本质上依赖这些空间结构的呈现方式。一旦构象被破坏,即使一级序列仍然存在,受体的识别与结合能力也会显著下降 [8]。
这意味着,**任何破坏关键构象或超微结构的加工过程——例如强碱处理、过度交联或高温变性——都会从源头削弱ECM的生物学功能。**不同脱细胞方法,本质上是在“去除细胞”与“保留结构”之间做权衡 [8]。
但不同层级的破坏,后果并不相同。如果损伤发生在分子构象层面(如三螺旋解构),识别基础将不可逆丧失;而如果仅破坏分子间的空间组装关系,在构象保留的前提下,胶原仍具有重新自组装形成有序结构的能力 [2]。
成分是清单,构象才是语言。清单齐全但语言破碎,细胞读到的就是乱码。
四、下一个问题:不是“有什么”,而是“保住了什么”
结构决定功能,但前提是结构被完整保留。
从纳米级的三螺旋构象,到微米级的原纤维注册关系,到宏观的孔隙网络——每一个层级都携带着细胞需要读取的信息。而在将天然ECM转化为临床可用材料的过程中,加工工艺是对结构最直接的威胁。脱细胞要去掉细胞,消毒要杀灭病原,成型要改变物理形态——每一步操作都在结构上留下代价。代价可以被控制,但不可能为零。
下一篇,我们就进入这个话题:工艺,不只是制造过程。它本质上是在重写 ECM 的结构语言。
参考文献
[1] Doyle AD, Wang FW, Matsumoto K, Yamada KM. One-dimensional topography underlies three-dimensional fibrillar cell migration. Journal of Cell Biology, 2009, 184(4): 481–490.
[2] Shoulders MD, Raines RT. Collagen structure and stability. Annual Review of Biochemistry, 2009, 78: 929–958.
[3] Frantz C, Stewart KM, Weaver VM. The extracellular matrix at a glance. Journal of Cell Science, 2010, 123(24): 4195–4200.
[4] Wolf K, te Lindert M, Krause M, et al. Physical limits of cell migration: control by ECM space and nuclear deformation and tuning by proteolysis and traction force. Journal of Cell Biology, 2013, 201(7): 1069–1084.
[5] Discher DE, Janmey P, Wang YL. Tissue cells feel and respond to the stiffness of their substrate. Science, 2005, 310(5751): 1139–1143.
[6] Engler AJ, Sen S, Sweeney HL, Discher DE. Matrix elasticity directs stem cell lineage specification. Cell, 2006, 126(4): 677–689.
[7] Hynes RO. The extracellular matrix: not just pretty fibrils. Science, 2009, 326(5957): 1216–1219.
[8] Badylak SF, Freytes DO, Gilbert TW. Extracellular matrix as a biological scaffold material: structure and function. Acta Biomaterialia, 2009, 5(1): 1–13.